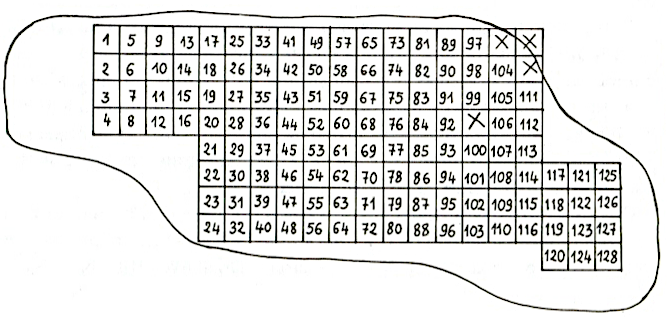
Fig. 1 — Aranĝo de la 128 kvadratoj studitaj sur arbŝelo kovrita de Physconia grisea-kunaĵo (X = nestuditaj kvadratoj pro difektiĝo de la ŝelo kaj likenoj).
fonto: Scienca Revuo, 1982 n-ro 141,
artikolo 1924 (PDF); redaktita teksto
laŭ permeso: CC BY-ND 4.0
En la studo de vegetaĵa kunaĵo, fitosociologo devas unue registri la vegetaĵaron en diversaj lokoj, kie kreskas la kunaĵo. La areo, kiun ĝi okupas, ege diversas laŭ la lokoj: de kelkaj cm² ĝis kelkaj dekoj da m² (iafoje eĉ pli) por la likenkunaĵoj. Plej ofte ne eblas studi tiel vastajn areojn; necesas elekti poan parton de ili. La plej malgranda areo, reprezentiva por la kunaĵo, nomiĝas minimuma areo: minimuma areo kvalita, se oni zorgas nur pri la listo de la specioj; minimuma areo kvanta, se oni atentas pri la kovreco de la specioj
Ĉi tiu nocio tre gravas en kriptogama fitosociologio, ĉar la identigado de specioj ofte tre malfacilas. Studi la kiel eble plej malgrandan areon ŝparigas multan tempon kaj ebligas precizan studon laŭkvalitan kaj laŭkvantan.
Antaŭ nelonge, Roux - Rieux (1980, 1981) studis la minimuman areon de du likenkunaĵoj kalkofilaj. Post provo de pluraj metodoj, evidentiĝis la plej kontentiga tiu de Gounot kaj Calleja (1962), kiu konsistas en la studo de mezsimileca koeficiento funkcie de la areo.
De post Hilitzer (1925), neniu grava studo pri likenkunaĵo surŝela estis publikigita. Pluraj likenologoj (i.a. Barkman 1958) menciis minimumareajn valorojn, sed eĉ ne aludas pri la uzita metodo. Do al likenofitosociologoj ege mankis fidindaj rezultoj tiukampaj, tiom pli, ke pluraj aŭtoroj (i.a. Gounot 1969) evidentigis, ke ĉiuj metodoj uzitaj antaŭ 1962 tre kontesteblas (do eĉ la rezultoj de Hilitzer pri Pseudevernietum furfuraceae estas kritikeblaj).
La elektita kunaĵo kreskis sur trunkŝelo de migdalarbo izola en natura ŝafpaŝtejo en Crau (pron. kro), 10 km n. de Fos-sur-mer (pron. fos sur mer), n. ok. de Marsejlo, Provenco, Francio, je altitudo de ĉ. 10 m. Post elpreno de ŝelpeco, ni dividis ĝin en 128 kvadratojn de 4 cm², entute 512 cm² (fig. 1). Ĉiun kvadraton ni studis kiel eble plej precize per stereomikroskopo, se necese kontrolante per mikroskopo la identigon de la specioj. La kovrecon de tiuj ĉi ni mezuris per diafana kvadratita folio el polietileno.
Fig. 1 — Aranĝo de la 128 kvadratoj studitaj sur arbŝelo kovrita de
Physconia
grisea-kunaĵo (X = nestuditaj kvadratoj pro difektiĝo de la ŝelo
kaj likenoj).
Sur la 512 cm² ni recenzis (tab. 1) nur 11 speciojn (el kiuj 4 muskoj); tio estas malgranda nombro kompare kun tiu de la kalkofilaj kunaĵoj antaŭe studitaj (Roux - Rieux 1980): 30 specioj sur la sama areo. Eĉ se la likenkunaĵoj surŝelaj kutime malpli riĉas je specioj ol la kalkofilaj, Physconia grisea-kunaĵo aparte malriĉas.
Krom ĉi tio, ĝin karakterizas la ega plejkovreco de likenoj folietecaj, ĉefe Physconia grisea (relativa mezkovreco: ĉ. 88%!), kaj malabundo de muskoj kaj krustecaj likenoj.
Tab. 1: Fitosocilogia registro de la studita areo (512 cm²): 126 kvadratoj de 4 cm²) kovrita de Physconia grisea-kunaĵo (kovreco en %; + signas malpli ol 0,01%; sf = senfrukta).
| 1 — Likenoj | ||
| sf | Candellariella concolor (DICKS.) STEIN | 1,25 |
| sf | Hyperphyscia adgluttinata (FLOERKE) MAYRH. et POELT | 0,50 |
| Lecanora chlarotera NYL. | 0,25 | |
| Lecanora sienae B. de LESD. | + | |
| Physcia aipolia (EHRH. ex HUMB.) FUNROHR | 1,38 | |
| P. biziana (MASSAL.) ZAHLBR. | 5,50 | |
| sf | Physconia grisea (LAMK.) POELT | 75,63 |
| 2 — Muskoj | ||
| sf | Orthotrichum diaphanum BRID. | + |
| st | Orthotrichum Sp. | + |
| sf | Tortula papillosa WILS. ex SPRUCE | 1,50 |
| sf | Zygodon baumgartneri MALTA | + |
| totala kovreco | 86,01 | |
| totala nombro da specioj | 11 |
Pro la plejkovreco de Physcia s.l. (Physconia, Physcia, Hyperphyscia), ĝi apartenas al alianco Xanthorion parietinae OCHSNER 1928 em. BARK. 1958 kaj tre afinas al Physcietum ascendentis physconiosum griseae BARK. 1958. Tamen ĉi tiu sintaksono diferencas de la provenca kunaĵo i.a. pro malesto de Physcia biziana (MASSAL.) ZAHLBR. (mediteranea specio) kaj ĉeesto de Ramalina fastigiata (PERS.) ACH., Phlyctis argena (ACH.) FLOTOW… (sufiĉe aerhumidejaj). Physcia biziana verŝajne karakterizas ĉu mediteranean subasocion de Physcietum ascendentis ĉu memstaran asocion, ambaŭ ankoraŭ ne priskribitajn; tial ne eblas ekzakte precizigi la sintaksonomian lokon de tiu kunaĵo, kiun ni provizore nomas Physconia grisea-kunaĵo.
Tipe nitreja kaj polveja, ĝi oftas en Malalta Provenco sur izolaj aŭ disaj arboj en kamparo.
Kiel ni diris enkonduke, pluraj metodoj estis proponitaj por determini la minimuman areon. La plej bone konata (tab. kaj fig. 2) baziĝas sur analizo de la kurbo pri la nombro da specioj funkcie de la studita areo (specio-area kurbo). La minimuma areo estas atingita, kiam la nombro da specioj ne plu aŭ kvazaŭ ne plu kreskas.
Tab. 2: Nombro da specioj funkcie de la areo kaj ilia apera ordo
| nombro de kv. | numeroj de kvadratoj | specioj | areo (cm²) |
nombro da taksonoj |
|---|---|---|---|---|
| 1 | 57 | Hyperphyscia adgluttinata, Physcia biziana, Physconia grisea, Tortula papillosa |
4 | 4 |
| 2 | 49; 57 | + Orthotrichum diaphanum | 8 | 5 |
| 4 | 49; 50; 57; 58 | + Candelariella concolor | 16 | 6 |
| 8 | 49; 50; 57; 58; 65; 66; 73; 74 | + Physcia aipolia | 32 | 7 |
| 16 | 49-52; 57-60; 65-68; 73-76 | + Physcia aipolia | 64 | 7 |
| 32 | la ĉi-supraj + 81-84; 89-92; 97-99; 104-106; 111-112 |
+ Lecanora chlarotera | 128 | 8 |
| 64 | la ĉisupraj + 85-88; 93-96; 100-103; 107-110; 113-128 |
+ Zygodon baumgartneri, Orthotrichum sp. | 256 | 10 |
| 128 | 1-128 | + Lecanora sienae | 512 | 11 |
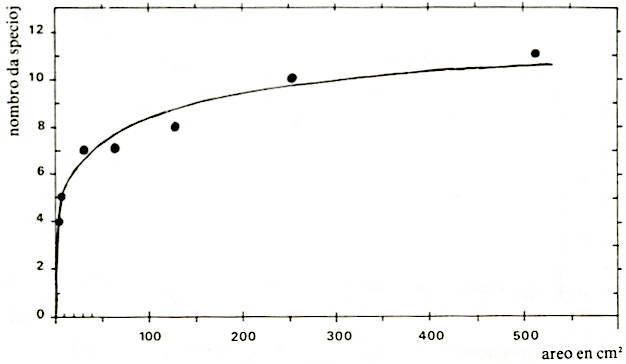
Fig. 2: Nombro da specioj funkcie de la studita areo (areo-specia
kurbo).
Fakte, pluraj aŭtoroj evidentigis, ke la nepliiĝo de la nombro da specioj plej ofte — se ne ĉiam — devenas de laciĝo de l’ observanto, kiu emas forgesi ne tre videblajn speciojn post obervado. Objektivaj studoj montras, ke la nombro da specioj daŭre kreskas logaritme (Gounot 1969; Gounot - Calleja 1962; Roux - Rieux 1980; fig. 3 de ĉi tiu artikolo). Tial la determino de la minimuma areo per tiu metodo ne estas objektiva, tiom pli, ke la formo de la kurbo dependas de la adoptita skalo (Roux - Rieux 1980, 75).
Pluraj metodoj, devenantaj de la areo-specia, celas al pli preciza determino de la minimuma areo. Sed ili estas aŭ neobjektivaj (metodo de Cain kaj Castro: Cain 1938; Cain-Castro 1959) aŭ arbitraj (metodoj de Boudouresque kaj Belsher 1978; de Vestal 1949; …) kiel evidentigis i.a. Gounot (1969) kaj Roux-Rieux (1980).
Fine la metodo pri konstantaj specioj (Du Rietz 1921) ne baziĝas sur la areo-specia kurbo, sed ne estas objektiva (Braun-Blanquet 1964; Gounot-Calleja 1962) kaj plie ne fidinde utiligebla por la studo de likenkunaĵoj.
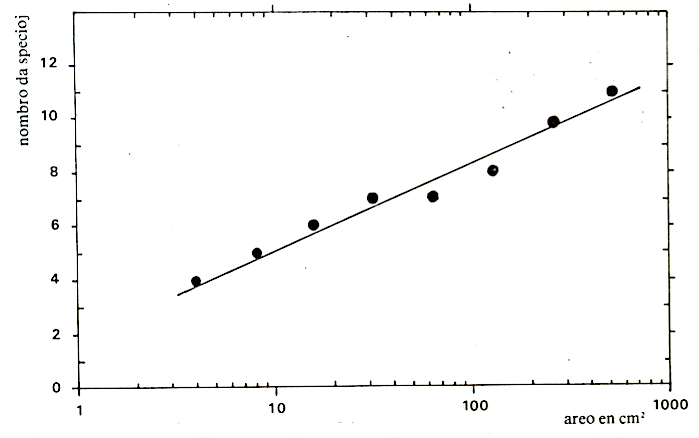
Fig. 3: Nombro da specioj funkcie de la studita areo (duonlogaritmaj
koordinatoj).
En 1962 Gouinot kaj Calleja proponis novan metodon de determino de la minimuma areo, bazitan sur la komparo de samlimaj areoj per simileca koeficiento. Malgraŭ la granda laboro postulata, ĉi tiu metodo pli kaj pli disvastiĝas pro objektiveco kaj nearbitreco (Gounot 1969; Boudouresque 1974; Coppejans 1977; Roux-Rieux 1980).
Ĉi tiu metodo konsistas en la komparo de 4 samlimaj kvadrat(ar)oj per simileca koeficiento kvalita, ekz. tiu de Sorensen (1948):
\(\displaystyle P_s=\frac{2c}{a+b}\),
kie
| \(P_s\) | simileca koeficiento kalkulota, |
| \(a\) | nombro da specioj en la kvadrat(ar)o A |
| \(b\) | nombro da specioj en la kvadrat(ar)o B |
| \(c\) | nombro da specioj komunaj al A kaj B. |
La duopa komparo de la 4 areoj donas 6 valorojn de la simileca koeficiento, kies averaĝon oni uzas por konstrui kurbon funkcie de la areo (kurbo) pri mezsimileca koeficiento funkcie de la areo.
La kurbo pri la mezsimileca koeficiento funkcie de la areo (tab. 3 kaj fig. 4) multe pli facile interpreteblas ol la areo-specia kurbo, ĉar ĝi asimptotas al rekto \(P_s\ge 1\)). La figuro montras, ke post pli malpli neregula kresko, la koeficiento stabiliĝas proksimume je valoro 0,73. Trans 64 cm² la area pliigo rezultigas nur iometan kreskon de la mezsimileca koeficiento kaj eĉ, trans 128 cm², iometan malpliiĝon.
Tab. 3: Valoroj de la mezsimilecaj koeficientoj de Sorensen kaj Kulczyński funkcie
| areo de la duope komparitaj kvadrat- (ar)oj en cm² |
simileca koeficiento | |||
|---|---|---|---|---|
| valoroj de Sorensen | valoroj de Kulczyński | |||
| ekstremaj | averaĝaj | ekstremaj | averaĝaj | |
| 4 | 0,40 - 0,80 | 0,58 | 0,95 - 1,0 | 0.98 |
| 8 | 0,33 - 0,67 | 0,61 | 0,13 -0,75 | 0,52 |
| 16 | 0,67 - 0,89 | 0,70 | 0,17 - 0,91 | 0,42 |
| 32 | 0,60 - 0,83 | 0,66 | 0,33 - 0,92 | 0,64 |
| 64 | 0,67 - 0,91 | 0,73 | 0,71 - 0,91 | 0,80 |
| 128 | 0,67 - 0,86 | 0,74 | 0,70 - 0,91 | 0,81 |
| 256* | 0,71 | 0,78 | ||
(*): nur du kvadrataroj komparitaj
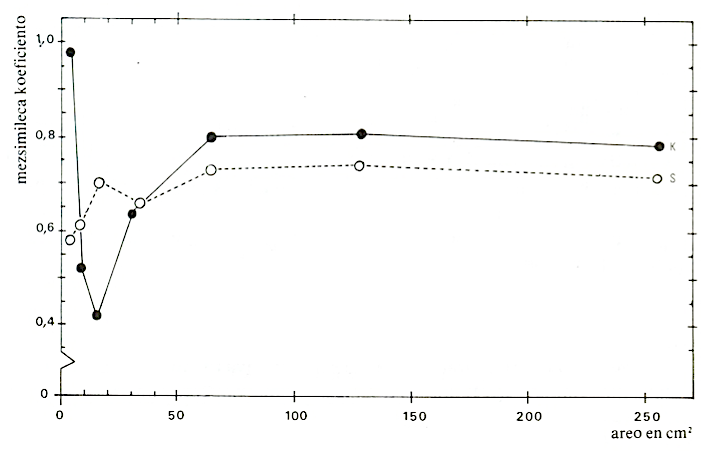
Fig. 4: Variada kurbo de la mezsimileca koeficiento funkcie de la
areo
S = koeficiento de Sorensen
K = koeficiento de Kulczyński
Ju pli la komparitaj areoj vastas, des pli ili havas komunajn speciojn kaj sekve intersimilas; sed la simileco ne iĝas totala, ĉar konstante aperas novaj specioj. Tamen, trans iu area valoro (ĉi tie 100 - 150 cm²) ĝi ne plu kreskas. Estas do logike akcepti, ke ne necesas studi multe pli grandajn areojn ol tiu ĉi, kiun oni povas rigardi kiel minimuman.
La minimuman areon kvantan oni povas determini (Coppejans 1977; Roux-Rieux 1980) samkiel la kvalitan, sed anstataŭigante la mezsimilecan koeficienton kvalitan per iu kvanta, ekz. tiu de Kulczyński (1927):
\(\displaystyle P_k=\frac{2\sum_{i=1}^n R_c}{\sum_{i=1}^n R_a+R_b}\),
kie
| \(R_a\) | kovreco de specio i en kvadrat(ar)o A, |
| \(R_b\) | kovreco de specio i en kvadrat(ar)o B, |
| \(R_c\) | malpli granda kovreco de specio i en A aŭ B. |
La koeficiento unue tre gravas (0,98 por 4 cm²), sed frue kaj ege malpliiĝas, poste rekreskas kaj fine stabiliĝas je valoro ĉ. 0,80. La interresponda minimuma areo kvanta takseblas inter 100 kaj 150 cm².
Tiaj gravaj valoroj de \(\overline{P_k}\), por tiaj malvastaj areoj klarigeblas pro la ega grupiĝemo de Physconia grisea. Se oni konsideras 4 samlimajn areojn malvastajn (ekz. 4 cm²), lokitajn ĉemeze de densa grupo da Physconia grisea, la koeficiento tre gravos; pliigante la studitan areon, oni transpasos la limon de ĉi tiu grupo, renkontos aliajn speciojn kun sufiĉa kovreco, por ke la koeficiento malpliiĝu. Tio ĉi evidentigas strukturajn kunaĵ-elementojn, kiujn ni ne povas ekstudi ĉi-artikole (v. Boudouresque-Lück 1972).
Klement (1948) kaj Barkman (1958) publikigis minimum-areajn valorojn de Physcietum ascendentis, respektive 260 cm² kaj 1000 - 2000 cm², sed ne menciis la uzitan metodon. Niaj rezultoj proksimas al tiuj de Klement; la trotaksita minimuma areo fare de Barkman verŝajne klarigeblas pro nesufiĉa enlaboratoria studo de la elektitaj areoj.
metodo de Gounot kaj Calleja (tab. 4)
La minimuma areo de Physconia grisea-kunaĵo proksimas al tiu de likenasocioj kun krustecaj taloj kalkofilaj, sed ankaŭ al tiu de alg-asocioj. Kompreneble ĝi estas multe malpli granda ol tiu de fanerogam-asocioj; krome konfirmiĝas, ke minimuma areo kvanta iafoje egalvastas al la kvalita (ĉilasta estas kutime rigardata kiel malpli granda), kio klarigeblas pro la ega grupiĝemo de iu(j) specioj), ĉi tie de Physconia grisea.
Tab. 4: Valoroj de minimumaj areoj kaj interrespondaj mezsimilecaj koeficientoj laŭ diversaj aŭtoroj.
| studitaj kunaĵoj | minimuma areo kaj interresponda mezsimileca koeficiento | ||
|---|---|---|---|
| kvalitaj | kvantaj | ||
| Boudouresque (1974) | algokunaĵo nesuneja | ≃200 cm²; 0,65 | – |
| Coppejans (1977) | algokunaĵo suneja | ≃200 cm²; 0,75 | ≃400 cm²; 0,87 |
| Roux-Rieux (1980) | likenkunaĵo krusteca, surkalkroka, suneja | ≃100 cm²; 0,80 | 200-300 cm²; 0,75 |
| likenkunaĵo enkalkroka, nesuneja | 300-400 cm²; ≥0,77 | 300-400 cm²; ≥0,73 | |
| Rieux-Roux (ĉi-artikole) | likenkunaĵo surŝela, suneja, nitreja, polveja | 100-150 cm²; 0,73 | 100-150 cm²; 0,80 |
| Gounot-Calleja (1962) | herbejo seka (Brachypodietum ramos) | ≃8 m²; 0,80 | – |
| Moravec (1973) | herbejo (Sanguisorbo -Deschampsietum) | ≃25 m²; 0,90 | – |
| herbeca kunaĵo marĉa (Caricetum vesicariae) | ≃16 m²; 0,79 | – | |
| fagaro | ≃100 m²; 0,71 | – | |
Niaj rezultoj klare montras, ke la minimuma areo de surŝelaj likenkunaĵoj folietecaj estas tre malgranda, kio ebligas ilian studon per la metodo de la totala elpreno: en homogena kunaĵo oni elprenas pecon — iom pli grandan ol la minimuman areon — da likenkovrita substrato, kiun oni studas kiel eble plej precize en laboratorio (Boudouresque 1974; Roux 1981).
Studoj pri la minimuma areo de aliaj surŝelaj kunaĵoj folietecaj estos necesaj por konfirmi niajn rezultojn. Sed, jam de nun, pro la relativa homogeneco de la rezultoj pri kunaĵoj sufiĉe diversaj, kaj algaj kaj likenaj, oni povas hipotezi — sen grava risko de eraro —, ke preciza studo enlaboratoria pri elprenaĵo po 200 - 400 cm² taŭgas por registri la plejmulton da surŝelaj kunaĵoj folietecaj. Sed necesas substreki, ke ĉi tio ne aplikeblas al la kunaĵoj riĉaj je foliecaj (ekz. Parmelia) aŭ arbedecaj (ekz. Usnea) taloj, kies minimuma areo devas logike esti multe pli granda pro la pli vastaj taloj.
Kompare kun la kutima metodo (parta elpreno: Clauzade-Roux 1975), tiu de la totala elpreno prezentas multajn avantaĝojn, i.a.: eblecon studi malgrandajn areojn; multe pli da precizeco en la kovreca mezuro. Sed kiam la substrato estas vivanta arbo, antaŭvideblas la danĝero de blinda uzo de ĉi tiu metodo kaj estas necese akcenti, ke oni nepre elektu nur freŝdate hakitajn aŭ baldaŭ hakotajn arbojn.
Barkman, J.J. (1958): Phytosociology and ecology of cryptogamic epiphytes. 628 p., Assen.
Boudouresque, C.F. (1914): Aire minima et peuplements algaux marins. - Soc. phycol. de France, 19, 141-157.
Boudouresque, C.F. Belsher T. (1919): Le peuplement algal du Port de Port-Vendres: recherches sur l’aire minima qualitative. - Cah. Biol. mar. fran., 20, 259-261.
Boudouresque, C.F. Lück H.B. (1972): Recherches de bionomie structurale au niveau d’un peuplement benthique sciaphile. - J. exp. mar, Biol. Ecol. 8(2), 133-144.
Cain, S.A. (1938): The species-area curve. - Amer. midl. Natur., U.S.A., 19, 573-581.
Cain, S.A., Castro de Oliveira, G.M. (1959): Manuel of vegetation analysis. - Harper and Brothers eldon., 325 p., New-York.
Clauzade, G. - Roux, Cl. (1915): Etude écologique et phytosociologique de la végétation lichénique des roches calcaires non altérées dans les régions méditerranéenne et subméditerranéenne du Sud-Est de la France. - Bull. Mus. Hist. nat. Marseille, 35, 153-208 (kun resumo en Esperanto).
Coppejans, E. (1977): Résultats d’une étude d’homogénéite de peuplements algaux photophiles sur substrat rocheux à Port-Cros et à Banyuls (France). - Rapp. Comm. int. Mer Médit., 24(4), 143-14.
Du Rietz, G.E. (1921): Zur metodologischen Grundlage der modernen Pflanzensoziologie. Akad. Abhandl., 272 p., Uppsala.
Gounot, M. (1969): Méthodes d’étude quantitative de la végétation. - Masson et Cie eldon., 314 p. Paris.
Gounot, M. - Calleja, M. (1962): Coefficient de communauté, homogénéite et aire minimale. Bull. Serv. Carte phytogéogr., serv. B, 7(2), 181-200.
Hilitzer, A. (1925): Étude sur la végétation épiphyte de la Bohème - Spisy přírodov. Fak. Karl. Univ. Praha.
Klement, O. (1948): Das Physcietum ascendentis in Schwaben. Ber. Naturf. Ges. Augsburg, 26-39.
Kulczyński, S. (1927): Zespoły roślin w Pieninach - Bull. int. Acad. Pol. Sci. Lett. Cl et nat., ser. B, supl. 2, 57-203. Cracovie.
Moravec, J. (1973): The determination of the minimal area of phytocenoses. Folia Geobo1. Phytotax., 8(1), 23-47.
Roux, C. (1981): Étude écologique et Phytosociologique des peuplements lichéniques saxicoles-calcicoles du SE de la France - Bibliotheca lichenologica, Cramer eldon., 15, 1-557 - (kun resumo en Esperanto)
Roux, C. - Rieux, R. (1980): L’aire minimale des peuplemenis de lichens crustaces saxicoles-calcicoles. - Rev. Biol. Ecol. medit., 7(27, 65-88 (kun resumo en Esperanto)
Roux C. - Rieux R. (1981): L’aire minimale des peuplemenis lichéniques: peuplements lichéniques saxicoles-calcicoles - Vegetatio, 44. 65-76.
Sorensen, T. (1948): A method establishing groups of equal amplitude in plant sociology based on similarity of species contents - Biol. Skr., 5(4), 1-34.
Vestal, A.G. (1949): Minimum areas for different vegetations. Their determinaton from species-area-curves.- Illinois biol. Monogr., 20(3), 1-129.
Mi rekomendis al prof. Roux, ke li konsentu pri anstataŭigo de lia “likeno” per “liĥeno”. Li tamen insistis resti ĉe la zamenhofa formo kun K.
Sur ĉi ekzemplo oni povas taŭge demonstri la lingvan politikon de la nuna SR: Kvankam en kelko da okazoj estus rekomendinde — cele al leksika kohereco de l’internacia scienca terminologio — substitui la zamenhofan K per Ĥ, mi neniam faros tion kontraŭ la deziro de l’aŭtoro.
Aliflanke, oni — precipe en popularaj Eo-revuoj — ofte renkontiĝas kun kontraŭfundamentaj K-formoj. Se SR-aŭtoro havas en sia manuskripto ekz. la vorton “mekanismo”, mi aŭtomate modifas ĝin al “meĥanismo”, kiu estas zamenhofa. Por apliki la fundamentan formon, la SR-redakto sendube ne bezonas esti aprobita de l’aŭtoro. AN
Ankoraŭ iometon pri la vorto “liĥen”. Transprenis ĝin medicino kaj poste ankaŭ botaniko pere de La: lichen (pluralo: lichenes) el Gr: λειχήν. Plej multo de l’eŭropaj, aziaj kaj afrikaj lingvoj posedas la fonemon Ĥ same kiel Eo, do inklinas apliki la ĝustan prononcon de la Gr-La-devenaj scienc-terminoj.
La supre eksplikita redakta procedo ja ne kondukas al senriproĉa leksikologia planlingveco de Eo. Tamen eblas kredi, ke perspektive, la fonetiko de la Gr-La-terminoj, asimilitaj de Eo, unuiĝos almenaŭ ĝis tiu grado, kiu estas atingita en la nacilingvoj. La kredon motivas ĝuste la rareco de zamenhofaj vortoj, kies fonetika modifo estus rekomendinda
J. Kavka